Le Blog du Prof — Pr Véronique Billat
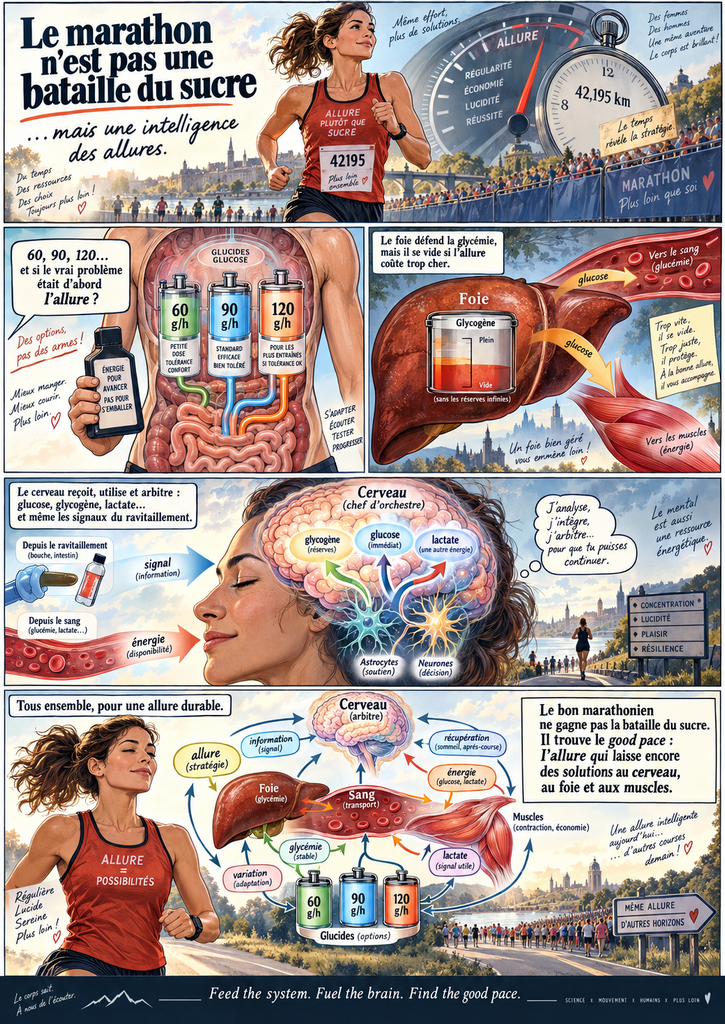
On assiste depuis quelque temps à une curieuse bataille dans le monde de l’endurance. Pendant des années, on a discuté du seuil, du VO₂max, de la VMA, des fameuses zones d’intensité ; aujourd’hui, le débat semble s’être déplacé dans les poches des coureurs : 60 grammes de glucides par heure, puis 90, puis 120. Et, comme souvent dans le sport, une valeur intéressante devient très vite une nouvelle norme avant même que l’on ait pris le temps de se demander à qui elle s’adresse, pour quelle intensité, quelle durée, quel niveau d’entraînement et avec quel intestin.
Je ne nie évidemment pas l’importance de l’apport glucidique pendant un effort prolongé. Les travaux récents sont passionnants, notamment ceux montrant qu’un apport de 120 g/h peut accroître l’oxydation des glucides exogènes par rapport à 90 ou 60 g/h chez des marathoniens de haut niveau. Mais ces mêmes données montrent aussi que les troubles gastro-intestinaux ne disparaissent pas par décret : nausées, sensation de plénitude gastrique et crampes sont précisément plus marquées avec les apports les plus élevés. Autrement dit, 120 g/h n’est ni absurde, ni miraculeux ; c’est une possibilité métabolique chez certains athlètes, dans certaines conditions, et certainement pas un nouveau commandement gravé sur une tablette de glucose (Ravikanti et al., 2025).
Ce qui me gêne surtout dans cette bataille du sucre, c’est qu’elle commence par la fin. Avant de demander combien de glucides un coureur doit absorber, il faudrait d’abord se demander combien son allure lui en fait consommer. Car la demande énergétique ne naît pas dans le gel que l’on ouvre au 25e kilomètre ; elle naît dans la vitesse que l’on impose à l’organisme depuis le départ.
Plus l’intensité augmente, plus le débit énergétique requis devient élevé et plus les glucides prennent une place importante dans la fourniture d’ATP. Cela ne signifie pas que l’on puisse convertir directement un coût énergétique en grammes de sucre à avaler : le muscle possède son glycogène, le foie contribue au maintien de la glycémie, les lipides participent à l’effort, le lactate circule entre les tissus et peut lui-même devenir substrat oxydatif. C’est précisément pour cela que les prescriptions universelles me laissent perplexe. Si vous partez trop vite, vous augmentez vous-même votre dépendance aux glucides ; ensuite, vous essayez de réparer avec votre estomac le problème que vous avez créé avec vos jambes.
La VMA ne connaît pas le temps
Je n’ai rien contre la mesure d’une vitesse maximale aérobie. Ce qui me paraît obsolète, c’est l’usage que l’on en fait parfois : une vitesse mesurée lors d’un protocole incrémental, puis un pourcentage soigneusement choisi, et voilà notre marathonien équipé de son allure théorique pour trois, quatre ou cinq heures.
Le problème est que l’organisme, lui, ne reste pas dans l’état physiologique dans lequel nous l’avons mesuré. Avec le temps, l’économie de course évolue, la disponibilité en glycogène change, la température corporelle augmente, la fréquence cardiaque dérive, la ventilation se réorganise, le recrutement musculaire se modifie et la perception de l’effort aussi. Le VO₂ lui-même peut ne plus présenter le même comportement pour une vitesse pourtant inchangée. Même chez des coureurs de très haut niveau étudiés autour de l’allure du marathon en deux heures, tous n’atteignaient pas un VO₂ véritablement stable à vitesse identique (Jones et al., 2021).
C’est tout le sens de ce que j’appelle VO₂max à l’épreuve du temps. Une vitesse ne devient physiologiquement intéressante que lorsqu’on lui ajoute une durée. Dire qu’un coureur vaut 18 km/h de VMA ne nous dit pas encore ce qu’il pourra maintenir après deux heures de course, ni comment il devra distribuer ses variations d’allure pour rester viable.
Et c’est aussi là que la question du sucre retrouve sa bonne place. Les travaux de Rapoport l’avaient déjà montré : le risque d’épuisement glucidique au marathon dépend de variables individuelles, notamment les réserves de glycogène, la masse musculaire engagée et la vitesse de course relative à la capacité aérobie. L’allure et le ravitaillement ne sont donc pas deux problèmes séparés ; ce sont deux faces de la même équation (Rapoport, 2010).
Ce que je propose est donc très simple : avant d’optimiser ce qui entre dans votre bouche, vérifions ce que votre allure exige réellement de votre organisme. Et justement, cette bouche elle-même est bien plus intéressante qu’on ne le croit.
Votre cerveau sait que le sucre arrive avant même qu’il soit absorbé
Une expérience de Chambers et collaborateurs reste, à mes yeux, l’une des plus élégantes de toute cette histoire. Des cyclistes entraînés se rincent simplement la bouche avec une solution contenant du glucose ou de la maltodextrine, sans nécessairement l’avaler. Leur performance s’améliore. Et lorsque les chercheurs observent le cerveau par IRM fonctionnelle, ils voient s’activer des régions impliquées notamment dans la récompense et le contrôle moteur, dont le cortex cingulaire antérieur, le striatum, l’insula et le cortex orbitofrontal (Chambers et al., 2009).
Autrement dit, le corps n’attend pas tranquillement que le glucide traverse l’intestin, passe dans le sang et finisse dans le muscle. Il reçoit déjà une information : du carburant est disponible.
Cela change la perspective. Le ravitaillement n’est pas uniquement une affaire de quantité énergétique. Il est aussi une affaire de signal. Et lorsqu’on parle de signal énergétique, il faut arrêter de considérer le cerveau comme une sorte d’ordinateur posé au-dessus des jambes. Il est lui-même un énorme consommateur d’énergie. Il ne représente qu’environ 2 % de la masse corporelle mais mobilise une part considérable de l’oxygène et du glucose utilisés par l’organisme (Mason, 2017).
Surtout, il ne subit pas passivement les variations de glucose : il les détecte. Des régions comme l’hypothalamus et le tronc cérébral comportent des réseaux sensibles à la disponibilité en glucose et participent aux réponses autonomes et hormonales qui contribuent à préserver l’homéostasie énergétique (López-Gambero et al., 2018).
Claude Bernard avait d’ailleurs déjà pressenti, bien avant nos montres GPS et nos gels au fructose, l’existence d’un véritable dialogue cerveau–foie dans le maintien du « milieu intérieur ». Les modèles modernes ont évidemment considérablement enrichi cette intuition, en décrivant un système neuroendocrinien où nutriments, hormones et centres cérébraux participent ensemble à la régulation du glucose (Obici & Martins, 2010). Le cerveau n’est donc pas seulement l’organe qu’il faudrait « nourrir ». Il participe lui-même à la décision de savoir comment l’énergie sera gérée. Et il possède même son propre petit garde-manger.
Le cerveau possède lui aussi du glycogène
Nous avons tellement pris l’habitude d’associer glycogène et muscle que l’on oublie volontiers que le cerveau en stocke lui aussi, principalement dans les astrocytes.
Chez le rat, Matsui et collaborateurs ont montré qu’après deux heures d’exercice prolongé associé à une hypoglycémie, le glycogène cérébral diminuait nettement dans plusieurs régions : cortex, hippocampe, cervelet, tronc cérébral et hypothalamus (Matsui et al., 2011). Je précise volontairement « chez le rat ». Il ne serait pas sérieux de transformer ces pourcentages en une jolie courbe du cerveau du marathonien au 35e kilomètre. Mais l’idée est essentielle : l’exercice prolongé peut solliciter des réserves glucidiques cérébrales, pas seulement musculaires.
Plus intéressant encore, cette réserve cérébrale semble elle aussi capable de s’adapter. Dans une étude suivante, les mêmes auteurs ont observé, toujours chez le rat, une supercompensation du glycogène cérébral après exercice exhaustif, notamment dans le cortex et l’hippocampe ; un entraînement répété augmentait également les concentrations basales de glycogène dans certaines régions (Matsui et al., 2012).
Voilà une idée qui me plaît beaucoup : pendant que nous parlons du muscle qui apprend à stocker, utiliser et restaurer son glycogène, le cerveau semble lui aussi développer sa propre adaptation énergétique. Cela nous éloigne déjà beaucoup de l’image rudimentaire d’un cerveau commandant des muscles comme un chef appuierait sur des boutons. Nous sommes devant un système énergétique intégré. Et c’est précisément ici qu’apparaît notre fameux lactate.
Le lactate, ce coupable idéal qui était surtout mal compris
Pendant longtemps, l’histoire était simple : le glucose était le bon carburant ; le lactate était le déchet. Puis le déchet devenait responsable de la brûlure musculaire, de l’acidose, de la fatigue et probablement, si l’on cherchait bien, du mauvais temps le jour du marathon.
Heureusement, la physiologie a un peu progressé. Nous savons aujourd’hui que le lactate est produit et utilisé en permanence, y compris dans des conditions parfaitement aérobies. Il constitue un intermédiaire métabolique majeur et peut être utilisé comme substrat énergétique par différents tissus. Brooks a largement contribué à renverser l’ancienne vision du lactate comme simple produit terminal de la glycolyse (Brooks, 2018).
Dans le cerveau, l’histoire est encore plus intéressante. Les astrocytes captent du glucose, stockent du glycogène et peuvent produire du lactate. Les neurones, très oxydatifs, sont capables d’utiliser ce lactate. Le modèle de l’astrocyte-neuron lactate shuttle propose donc une véritable coopération énergétique entre cellules gliales et neurones. Magistretti et collaborateurs décrivent cette organisation dans laquelle l’augmentation de l’activité cérébrale mobilise fortement le métabolisme astrocytaire et peut favoriser le transfert de substrats comme le lactate vers les neurones (Magistretti & Allaman, 2018).
Il faut néanmoins résister à la tentation de remplacer un dogme par un autre. Le glucose reste un substrat central du cerveau, et la contribution quantitative respective du glucose et du lactate dans différentes situations reste discutée. Dienel rappelle justement que les modèles de transfert de lactate entre astrocytes et neurones ne sont pas complètement résolus et dépendent des conditions expérimentales (Dienel, 2019). C’est pourtant précisément ce qui rend l’exercice si intéressant : il crée une situation dans laquelle le lactate sanguin augmente fortement, donnant au cerveau l’occasion de l’utiliser.
Pendant l’exercice, le cerveau brûle réellement du lactate
Là, nous quittons la spéculation. Van Hall et collaborateurs ont utilisé du lactate marqué au carbone 13 chez des sujets sains. Lorsque la lactatémie augmentait, la captation cérébrale de lactate augmentait elle aussi, jusqu’à contribuer de manière importante au métabolisme énergétique cérébral. Dans leurs conditions expérimentales, la contribution du lactate systémique à la dépense énergétique du cerveau atteignait environ 27 % pendant l’exercice (van Hall et al., 2009).
Quistorff, Secher et Van Lieshout avaient déjà décrit cette transition : au repos, le cerveau libère une petite quantité de lactate ; lors d’un exercice intense associé à une forte lactatémie, il en capte proportionnellement à sa concentration artérielle (Quistorff et al., 2008).
Et Secher et Quistorff avaient souligné un point particulièrement élégant : lorsque la captation de lactate augmente, celle de glucose peut diminuer, suggérant que le lactate joue temporairement un rôle d’épargne du glucose cérébral (Secher & Quistorff, 2005).
Ce n’est donc pas simplement « le muscle qui fabrique du lactate et le foie qui s’en débarrasse ». C’est un véritable échange de carburants entre organes. Le muscle produit, le sang transporte, le cerveau peut capter. Et cela nous conduit à une idée encore plus intéressante : le lactate n’est peut-être pas seulement une molécule énergétique. Il peut aussi être une information.
Du muscle au cerveau : le lactate comme message
Les données récentes explorent de plus en plus le rôle du lactate dans la neuroplasticité. Huang et collaborateurs proposent qu’il puisse participer à certaines adaptations cérébrales induites par l’exercice, notamment en interaction avec les mécanismes neurotrophiques et vasculaires. Les auteurs restent prudents sur la causalité, ce qui est important (Huang et al., 2021).
Chez la souris, Park et collaborateurs ont montré qu’un exercice intense augmentait simultanément le lactate sanguin, l’expression de PGC-1α et plusieurs marqueurs liés au métabolisme mitochondrial et au BDNF dans l’hippocampe. Bloquer les transporteurs du lactate diminuait plusieurs de ces réponses (Park et al., 2021).
Chez l’humain, le tableau est plus nuancé, comme souvent. Une méta-analyse de 22 essais randomisés montre néanmoins qu’une séance de HIIT augmente aiguëment le BDNF périphérique par rapport à une condition contrôle (Rodríguez-Gutiérrez et al., 2024). Une étude récente a également observé des associations entre l’augmentation de la lactatémie, celle de la noradrénaline et celle du BDNF mature circulant, tandis que l’échange cérébral de lactate dépendait principalement de la lactatémie (Tarassova et al., 2026).
Il serait excessif d’en conclure que « plus de lactate = meilleur cerveau ». Ce serait retomber exactement dans le travers que je critique avec les 120 g de glucides. Mais on peut raisonnablement dire ceci : le lactate appartient à un dialogue muscle–sang–cerveau beaucoup plus riche qu’une simple gestion des déchets métaboliques. Et cela change aussi la façon dont nous devons envisager le fameux « mur ».
Le mur n’est peut-être pas simplement un réservoir vide
Depuis des décennies, le mur du marathon est principalement raconté comme une histoire de glycogène. Le coureur épuise ses réserves, l’utilisation des glucides devient insuffisante, la puissance disponible chute et la vitesse s’effondre.
Cette histoire contient évidemment une grande part de vérité. Les travaux historiques de Bergström et Hultman ont montré depuis longtemps que le glycogène musculaire diminue pendant le travail et que la capacité d’exercice se dégrade lorsque ces réserves deviennent très faibles (Bergström & Hultman, 1967).
Mais je pense que le mur est plus intéressant que cela. Ce qui me frappe dans nos observations, c’est que le coureur ne semble pas simplement « manquer d’essence » d’une seconde à l’autre. Il perd progressivement quelque chose de plus subtil : la possibilité d’adapter son comportement.
Au début de la course, il peut jouer avec son allure. Il accélère légèrement dans une portion favorable, ralentit ensuite, modifie sa longueur de foulée, sa cadence, sa respiration. Son système dispose encore de nombreuses solutions pour absorber les perturbations. Plus tard, cette liberté se réduit. Et c’est ici qu’intervient la notion d’entropie.
L’entropie, sans thermodynamique de comptoir
On peut expliquer l’entropie très simplement : elle nous renseigne sur la richesse ou la diversité des états possibles d’un signal. Un signal vivant n’est jamais parfaitement régulier. Il varie, parce qu’un organisme adapte en permanence sa réponse.
Cette variabilité n’est pas nécessairement du bruit. Elle peut être le signe qu’un système conserve des degrés de liberté. Imaginez une foulée capable de s’adapter constamment aux contraintes. Elle n’est jamais exactement identique d’un pas à l’autre, et c’est précisément ce qui lui permet de rester efficace.
Lorsque cette diversité diminue fortement, le système devient plus stéréotypé. Il répète davantage la même solution, jusqu’au moment où cette solution elle-même devient impossible à maintenir. C’est ce que j’appelle une contraction de l’espace des possibilités.
Et c’est là que le mur peut être relu autrement. Plutôt que de penser seulement « il n’y a plus assez de glycogène », nous pouvons nous demander : combien d’états physiologiques encore compatibles avec cette allure restent accessibles au coureur ? Si cet espace se réduit suffisamment, une petite perturbation qui était absorbée dix kilomètres auparavant devient soudain irréversible. La vitesse chute. Et elle ne revient plus.
C’est ici que naît le MVSS
Le Maximal Viable State Space, ou MVSS, correspond précisément à cet ensemble d’états dans lesquels l’organisme peut évoluer tout en conservant la possibilité de revenir vers une organisation compatible avec la poursuite de l’effort.
Ce concept change profondément notre manière de penser le « steady state ». Nous avons passé des décennies à chercher des valeurs qui ne bougent pas : un lactate stable, un VO₂ stable, une fréquence cardiaque stable, une vitesse stable. Mais un organisme vivant n’est pas un tube à essai.
Il peut être stable tout en variant. Et même, j’irais plus loin : il peut être stable parce qu’il varie.
La vitesse peut augmenter puis redescendre. Le VO₂ peut répondre avec un retard. La ventilation peut anticiper. La fréquence cardiaque peut dériver légèrement. Le lactate peut augmenter puis être réutilisé. La cadence et la longueur de foulée peuvent se redistribuer. Ce qui compte, ce n’est pas que tout soit immobile. Ce qui compte est la capacité du système à revenir. C’est précisément cette capacité qui, selon mon hypothèse, se réduit progressivement à l’approche du mur.
Et le cerveau dans le mur ?
C’est là que commence notre travail expérimental, et je veux être très précise sur ce point : nous sommes encore dans l’hypothèse.
Nous observons simultanément des signaux métaboliques, cardio-respiratoires, mécaniques et cérébraux. L’objectif est de voir si la contraction du MVSS est précédée ou accompagnée de modifications détectables dans leur organisation temporelle.
Nous nous intéressons notamment aux relations entre fréquence respiratoire, fréquence cardiaque, VO₂, VCO₂, vitesse, cadence, longueur de foulée et EEG. Pour le cerveau, nous suivons les bandes alpha, bêta, theta ainsi que certains rapports comme alpha/bêta. L’idée n’est surtout pas d’écrire aujourd’hui que « le mur est causé par une augmentation de bêta ». Ce serait beaucoup trop simple, et probablement faux sous cette forme.
Notre question est plus intéressante : à mesure que le système périphérique perd ses degrés de liberté, la commande cérébrale devient-elle elle aussi plus contrainte ? Autrement dit, peut-on détecter une transition d’un contrôle riche, flexible et adaptable vers une commande plus stéréotypée, plus coûteuse et finalement inefficace ?
Si cette hypothèse est confirmée, alors le mur ne sera plus seulement quelque chose que l’on constate au moment où la vitesse s’effondre. Il pourrait devenir quelque chose que l’on détecte avant. Et voilà pourquoi la question de l’allure devient centrale.
Adieu cinq minutes aux zones 1, 2, 3, 4, 5…
Nous avons aujourd’hui développé une véritable passion pour les zones. Zone 1. Zone 2. Zone 3. Zone 4. Zone 5. Puis la zone 2 haute, la zone 3 basse, la zone seuil, la zone tempo, la zone sweet spot, la zone critique… À ce rythme-là, nous finirons probablement avec une zone 3,72 « Performance Plus », disponible uniquement avec l’abonnement Premium de la montre.
Pendant ce temps, l’organisme continue assez tranquillement à ignorer les couleurs affichées sur l’écran.
Je ne dis évidemment pas que les domaines physiologiques n’existent pas. Je dis qu’il me paraît dangereux de transformer un système vivant, continu, adaptatif et dépendant du temps en cinq tiroirs parfaitement étanches.
Le test de RABIT s’inscrit précisément contre cette simplification. Il ne cherche pas seulement à dire : « votre VMA est de 17,4 km/h ». Il cherche à observer comment vous passez d’un état à l’autre : comment votre VO₂ répond lorsque vous accélérez, comment votre VCO₂ évolue, comment votre respiration s’ajuste, comment votre fréquence cardiaque suit ou décroche, comment votre cadence et votre longueur de foulée se redistribuent, comment votre perception de l’effort se transforme. Et surtout : jusqu’où pouvez-vous varier sans sortir de votre fenêtre métabolique viable ?
C’est cela qui m’intéresse. Pas une vitesse idéale gravée dans le marbre. Une fenêtre.
The Good Pace
Voilà ce que j’appelle the good pace. Ce n’est pas nécessairement la vitesse que vous êtes capable de maintenir le plus rigidement. C’est plutôt une allure moyenne autour de laquelle votre système conserve suffisamment de liberté pour accélérer, ralentir, corriger, récupérer et revenir.
Cette idée peut sembler presque paradoxale après des décennies passées à expliquer au marathonien qu’il devait devenir un métronome. Je pense au contraire que la bonne performance est peut-être celle qui conserve juste assez de variation pour ne pas devenir rigide. Car la rigidité, en physiologie, est rarement une qualité.
Et une fois que cette fenêtre d’allure est définie, alors, oui, nous pouvons revenir à la nutrition.
Du Good Pace au Good Fuel
À ce moment-là seulement la question « 60, 90 ou 120 g/h ? » devient réellement intéressante. Nous ne cherchons plus à appliquer une recommandation générale. Nous cherchons à savoir quelle disponibilité glucidique permet de préserver la viabilité de l’organisme à l’allure choisie, pendant la durée prévue.
Pour un coureur, 60 g/h pourront parfaitement convenir. Pour un autre, 90 g/h seront utiles. Pour certains athlètes très entraînés, à forte dépense énergétique et capables de tolérer de grandes quantités de glucides, 120 g/h pourront constituer une stratégie pertinente.
Mais 120 n’est pas « mieux » parce que 120 est supérieur à 90. Le tube digestif n’est pas impressionné par les records numériques. Et si vous devez forcer votre alimentation pour soutenir une allure qui n’était pas physiologiquement viable dès le départ, vous n’avez rien optimisé. Vous avez simplement déplacé le problème.
Vous vouliez éviter le mur énergétique ? Vous risquez d’obtenir un mur intestinal. C’est moins glorieux, mais tout aussi efficace pour ralentir.
Le marathon n’est pas une bataille du sucre
Il est beaucoup plus intéressant que cela. Le muscle utilise son glycogène. Le foie protège la glycémie. L’intestin apporte des glucides exogènes. La bouche informe déjà le cerveau de leur présence. Le cerveau détecte l’état énergétique. Les astrocytes possèdent leurs propres réserves. Le lactate produit par les muscles circule, peut être capté et oxydé par le cerveau et participe probablement aussi à certains mécanismes de signalisation.
La ventilation change. La fréquence cardiaque dérive. La foulée s’adapte. Le cerveau ajuste la commande. Et de l’interaction de tout cela émerge votre vitesse.
Voilà pourquoi je préfère penser le marathon comme un problème de viabilité dynamique plutôt que comme une simple gestion de réservoir. Le bon coureur n’est peut-être pas celui qui impose coûte que coûte la même allure au kilomètre près. C’est peut-être celui qui reste suffisamment longtemps dans une région physiologique où son organisme possède encore plusieurs solutions.
Et si je devais résumer tout cela en une seule idée, ce serait celle-ci : ne nourrissez pas une mauvaise allure. Commencez par trouver l’allure que votre système peut réellement habiter. Ensuite, nourrissez cette allure. Préservez votre glucose, mais n’ayez pas peur du lactate. Gardez suffisamment de liberté dans votre foulée, votre respiration et votre métabolisme pour pouvoir encore vous adapter quand le marathon commencera réellement — c’est-à-dire bien après que l’euphorie du départ aura disparu.
« Est-ce que l’allure que je cours aujourd’hui me laisse encore suffisamment de solutions pour courir demain… enfin, dans deux heures ? »
C’est cela, pour moi, the good pace. Et c’est probablement par là qu’il faut commencer.
Pr Véronique Billat
Le Blog du Prof
Références citées
Bergström J, Hultman E. A study of the glycogen metabolism during exercise in man. Scand J Clin Lab Invest. 1967;19:218–228.
Brooks GA. The Science and Translation of Lactate Shuttle Theory. Cell Metab. 2018.
Chambers ES, Bridge MW, Jones DA. Carbohydrate sensing in the human mouth: effects on exercise performance and brain activity. J Physiol. 2009;587:1779–1794.
Dienel GA. Brain Glucose Metabolism: Integration of Energetics with Function. Physiol Rev. 2019;99:949–1045.
Huang Z, Zhang Y, Zhou R, Yang L, Pan H. Lactate as Potential Mediators for Exercise-Induced Positive Effects on Neuroplasticity and Cerebrovascular Plasticity. Front Physiol. 2021;12:656455.
Jones AM, et al. Physiological demands of running at 2-hour marathon race pace. J Appl Physiol. 2021.
López-Gambero AJ, Martínez F, Salazar K, Cifuentes M, Nualart F. Brain Glucose-Sensing Mechanism and Energy Homeostasis. 2018.
Magistretti PJ, Allaman I. Lactate in the brain: from metabolic end-product to signalling molecule. Nat Rev Neurosci. 2018.
Mason S. Lactate Shuttles in Neuroenergetics—Homeostasis, Allostasis and Beyond. Front Neurosci. 2017;11:43.
Matsui T, et al. Brain glycogen decreases during prolonged exercise. J Physiol. 2011;589:3383–3393.
Matsui T, et al. Brain glycogen supercompensation following exhaustive exercise. J Physiol. 2012;590:607–616.
Obici S, Forcina Martins PJ. The Role of Brain in Glucose Metabolism. In: Principles of Diabetes Mellitus. 2010.
Park J, Kim J, Mikami T. Exercise-Induced Lactate Release Mediates Mitochondrial Biogenesis in the Hippocampus of Mice via Monocarboxylate Transporters. Front Physiol. 2021;12:736905.
Quistorff B, Secher NH, Van Lieshout JJ. Lactate fuels the human brain during exercise. FASEB J. 2008;22:3443–3449.
Rapoport BI. Metabolic Factors Limiting Performance in Marathon Runners. PLoS Comput Biol. 2010;6:e1000960.
Ravikanti S, et al. 13C-labelled glucose-fructose show greater exogenous and whole-body CHO oxidation and lower O2 cost of running at 120 versus 60 and 90 g·h−1 in elite male marathoners. 2025.
Rodríguez-Gutiérrez E, et al. Effectiveness of high-intensity interval training on peripheral brain-derived neurotrophic factor in adults: a systematic review and network meta-analysis. Scand J Med Sci Sports. 2024;34:e14496.
Secher NH, Quistorff B. Brain glucose and lactate uptake during exhaustive exercise. J Physiol. 2005;568:3.
Tarassova O, et al. Physiological predictors of exercise-induced increases in circulating BDNF isoforms and net cerebral lactate exchange in healthy adults. Front Physiol. 2026.
van Hall G, et al. Blood lactate is an important energy source for the human brain. J Cereb Blood Flow Metab. 2009;29:1121–1129.
Laisser un commentaire